Het sequoia-mysterie: hoe zuigt een boom water 100 meter omhoog?
Je zou denken dat negatieve druk onmogelijk is: in vacuüm is de absolute druk nul en iets kan niet ‘leger’ dan vacuüm zijn. Toch bestaat negatieve druk wel degelijk, legt Rinke Wijngaarden uit. Dit verschijnsel lijkt ook nodig om te kunnen verklaren hoe een sequoiaboom van 100 meter sap omhoog zuigt, naar de hoogste bladeren.
Tijdens de Nationale Wetenschapsquiz van 2003 ontstond een ernstig meningsverschil. Eén jurylid beweerde dat bladeren van bomen door verdamping water vanuit de wortels opzuigen, terwijl een ander zei dat water ‘natuurlijk’ nooit meer dan 10 meter omhoog gezogen kan worden. Immers, bij een grotere hoogte zou de vloeistofdruk bovenin negatief zijn.¹
Meer dan twintig jaar later wordt nog steeds onderwezen dat het onmogelijk is om water meer dan 10 meter omhoog te zuigen – zie bijvoorbeeld de vernieuwingscommissie Nieuwe Natuurkunde en het veelgebruikte boek Physics for Scientists & Engineers van Douglas Giancoli. Hoog tijd om dit eens goed uit te pluizen.
Hangend kwik
Daarvoor kijken we naar een kwikbarometer, zoals te zien in de figuur hieronder. Een glazen buis B staat in een vaatje dat met kwik is gevuld en de bovenkant van de buis is vacuüm. Op het vrije oppervlak van het kwik in het vaatje is de druk gelijk aan de luchtdruk: patm = 1 atmosfeer (atm) of, in SI-eenheden, 101.325 pascal. (We gebruiken hier overal de absolute druk: in vacuüm geldt dus p=0.) Boven in de buis is de druk in het kwikoppervlak gelijk aan de druk er vlak boven: . In de kwikkolom in buis B neemt de druk van beneden naar boven af volgens de hydrostatische drukvergelijking:
Δp = ρgh (1)
Vanuit de bekende druk van 1 atmosfeer aan de onderkant kunnen we uitrekenen op welke hoogte de druk in het kwik nul is en dus hoe hoog het kwik staat bij een luchtdruk van 1 atm. Voor kwik met p vinden we ongeveer h = 76 cm := h.
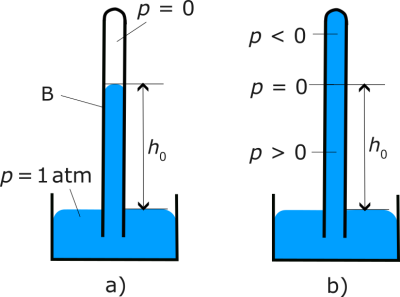
Kwikbarometer, met links de normale situatie met aan de bovenkant een lege ruimte onder vacuüm en rechts de situatie waar het kwik na het vullen bovenin is blijven hangen.
Bij het maken van de barometer houdt men de buis met de bovenkant schuin naar beneden en giet hem helemaal vol. Vervolgens wordt de buis afgesloten, rechtop gezet in een bakje met kwik en geopend. Zo ontstaat normaal gesproken de situatie links op de figuur, met boven in de buis vacuüm. Maar het kwik blijkt hierbij soms boven in de buis te blijven ‘hangen’ (figuur rechts). Dat is vreemd, omdat op de hoogte de druk 0 is. Daarboven neemt de druk volgens vergelijking (1) nog verder af en heerst er in het kwik dus een negatieve druk.
Christiaan Huygens ontdekte dit blijven ‘hangen’ al in 1661 en communiceerde dat aan de Engelse Royal Society.² In 1663 bereikte Robert Boyle, tijdens een vergadering van datzelfde gezelschap en in het bijzijn van Huygens, een hoogte van 190 centimeter. Daarbij was de druk helemaal boven in het kwik dus -1,5 atmosfeer. Let wel: er is hier geen truc met definities. Overal in de buis is ‘druk’ wat we in het dagelijks natuurkundig leven hydrostatische druk noemen.
Brekende vloeistof
Dat negatieve druk bestaat, is eigenlijk niet zo vreemd. Een ijzeren staaf kan men samenpersen (positieve druk), maar ook uitrekken (negatieve druk). Omdat in een vloeistof de moleculen elkaar aantrekken, is ook daarin negatieve (maar nu: isotrope) druk mogelijk. Net als bij de ijzeren staaf is er in een vloeistof een maximale negatieve druk: de vloeistof mag niet ‘breken’, dat wil zeggen: mag geen dampbellen vormen. Gelukkig kan een beginnend dampbelletje niet groeien, waardoor zo’n dampbel niet zo makkelijk ontstaat.
Een dampbel wil enerzijds krimpen door de oppervlaktespanning γ, maar anderzijds uitzetten, doordat de dampspanning in de bel pg groter is dan de druk in de vloeistof pl (die is immers negatief). De bel groeit als het tweede effect overheerst. Een korte berekening laat zien dat de bel groeit mits:
Δp = pg−pl > 2 γ/R (2)
Omdat pl negatief is, is Δp altijd positief. Uit vergelijking (2) volgt ook dat een bel alleen groeit als R > Rs := 2 γ/Δp. Uiteraard begint een bel met R = 0 en dus is voor geen enkel drukverschil aan de groeivoorwaarde voldaan. Mocht er toch een dampbel ontstaan met R < Rs, dan krimpt die weer. Maar de vloeistof ‘breekt’ wél als er ergens al een klein luchtbelletje aanwezig is met R > . Inderdaad blijkt dat het kwik alleen blijft ‘hangen’ als het kwik en de buis heel goed schoon zijn.
Negatieve hydrostatische druk werd experimenteel aangetoond in bovengenoemde experimenten van Christiaan Huygens en de Royal Society. In 1970 maakte Alan Hayward van het National Engineering Laboratory in Schotland zelfs een waterpomp die continu water opzoog tot een hoogte van 17 meter, terwijl zoals gezegd nog steeds beweerd wordt dat dat helemaal niet kan. De druk bij de pomp was in dit geval dus -0,7 atmosfeer: behoorlijk negatief! Dit lukte Hayward doordat hij er vooraf voor zorgde dat alle aanwezige (lucht)bellen groter dan Rs verdwenen. Nog extremere negatieve druk werd in 1911 door A. Julius Meyer van de Universiteit van Breslau (-34 atmosfeer) en in 1953 door Lyman Briggs van het National Bureau of Standards in Washington (-425 atmosfeer) bereikt in horizontaal ronddraaiende buizen.
Huidmondjes
En hoe zit het nu met de discussie bij de Nationale Wetenschapsquiz van 2003 over het saptransport in bomen? Kan het sap in een sequoia van 100 meter omhoog gezogen worden of niet?
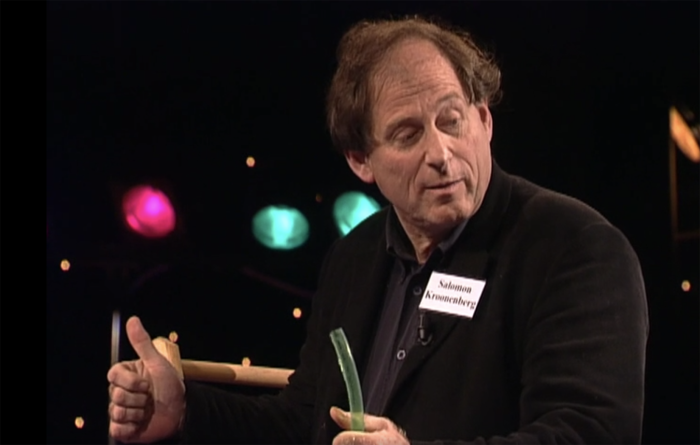
Tijdens de Nationale Wetenschapsquiz van 2003 ontstond er bij de vraag ‘Waarom worden bomen niet hoger dan 120 meter?’ een meningsverschil tussen juryleden. Na de demonstratie met uitleg van geoloog Salomon Kroonenberg riep een jurylid: “Dat is onzin! Als je gaat zuigen, kun je water nooit hoger krijgen dan 10 meter!”
Bomen nemen water op uit de grond en vervoeren dat (na filtering door de wortels) via zogeheten xyleembuisjes met een diameter van 10 tot 100 micrometer naar de bladeren. Omdat deze buisjes uit dode cellen bestaan, moet het transport zuiver natuurkundig verklaard kunnen worden. In dunne buisjes met straal staat water hoger dan in dikke buizen. Door deze zogenoemde ‘capillaire werking’ wordt water omhoog getrokken over een hoogte:
Δh ≈ 2 γ/(Rρg) (3)
Zelfs voor een buisje met een dikte van 10 micrometer is dat echter slechts 3 meters extra. En omdat 10 meter plus 3 meter lager is dan de gemiddelde sequoia, kan capillaire werking het saptransport niet verklaren.
De gangbare theorie voor saptransport in planten is de cohesion-tension-theorie (CTT) uit 1895. Het idee is als volgt. Door verdamping van water uit de huidmondjes in de bladeren trekt het water vlak achter de huidmondjes zich naar binnen terug, waardoor een kromme meniscus ontstaat. De oppervlaktespanning van de meniscus veroorzaakt – net zoals in een capillair – een negatieve druk op het water in de xyleembuizen, die verbonden zijn met het huidmondje en geheel gevuld zijn met water.³ Hierdoor wordt het water via de xyleembuizen uit de grond opgezogen. In deze theorie leveren de wortels geen positieve druk. Voor een sequoia van 100 meter is dan bij de bladeren (eigenlijk: schubnaalden) een druk van -10 atm nodig. Als je ook rekening houdt met het volume aan water dat verdampt, blijkt er voor voldoende volumestroom door deze lange dunne buisjes zelfs -20 atm nodig.⁴ Deze waarden zijn veel groter dan die in bovenstaande kwikbarometerexperimenten werden waargenomen. Geen wonder dat er tijdens de Wetenschapsquiz discussie ontstond.
Afgesneden blad
Laten we nog wat dieper ingaan op een aantal aspecten van dit saptransport. Als je in het voorjaar een wijntak afsnijdt, loopt daar water uit: de druk is positief. Inderdaad leveren de wortels van een aantal planten en bomen in het voorjaar een positieve druk, maar vriend en vijand van de CTT zijn het er over eens dat dit een tijdelijk en niet algemeen verschijnsel is.
Maar ook de negatieve druk is problematisch: volgens vergelijking (3) is deze bij een huidmondje van 5 micrometer slechts genoeg voor opzuiging over 6 meter. Misschien is het weefsel achter de huidmondjes sponsachtig, met vele kleine gaatjes: bij een diameter van 10 nanometer zou je theoretisch zelfs een hoogte van 3000 meter kunnen overbruggen. In alle gevallen is echter volgens de CTT boven in de boom een veel grotere negatieve druk nodig dan gehaald in enig experiment (behalve in roterende buizen).
De druk in bomen en planten meten plantkundigen door boven aan de boom een blad af te snijden, waarbij – door de negatieve druk in het blad – het sap het blad wordt ingezogen. Vervolgens plaatsen ze het blad in een drukvat, waarbij de steel door een rubberen afdichting buiten het vat uitsteekt. De druk in het vat wordt verhoogd totdat er sap uit de bladsteel komt. Men neemt die druk, met een minteken, als de druk die heerste in de steel voordat het blad werd afgesneden.
Met deze methode worden waarden tot -50 atm gevonden in een aantal verschillende bomen en planten, met inderdaad de laagste druk boven in de boom.⁵ Uiteraard kan deze meting verstoord worden door verdamping uit het blad na het afsnijden, maar ook door de inklemming in het rubber.
Goede metingen
Een meer recente methode is het aanprikken van een xyleemvat met een glascapillair dat van een drukmeter is voorzien. Daarmee worden in planten beduidend lagere waarden gevonden: tot hooguit -10 atm. Overigens varieerde de druk bij deze experimenten van positief gedurende de nacht naar negatief tijdens de dag. Helaas is deze methode door de kwetsbaarheid van het capillair niet bruikbaar voor bomen.
Al met al lijkt de CTT wel belangrijke elementen te bevatten voor de verklaring van de sapstroom van de wortels naar de bladeren, maar niet volledig te zijn. Biotechnoloog Ulrich Zimmermann van de Universiteit van Würzburg in Duitsland kwam met een aangepast en ingewikkelder model, waarbij echter nog steeds behoorlijk negatieve drukken nodig zijn.⁶
Goede non-invasieve en continue metingen aan de druk in bomen zijn dus nodig om definitief helderheid te verschaffen. Dit artikel is een oproep daartoe: fysici kunnen wellicht een belangrijke rol daarin spelen. Zo zijn er recent door Jiaju Hong van de Maritieme Universiteit van Dalian in China MRI-metingen gedaan die ruimtelijk opgelost wel de snelheid, maar niet de druk van de sapstroom meten.
Ontzilt zeewater
Er zijn nog niet veel toepassingen van negatieve druk⁷, maar er zijn zeker mogelijkheden. Ter inspiratie een paar voorbeelden uit de natuur. De octopus kan met zijn zuignappen een druk van -1,7 atm maken, waardoor een grotere trekkracht ontstaat dan door ‘slechts’ vacuümzuigen. Natuurlijk kunnen deze dieren dit alleen door van een vloeistof gebruik te maken. Wij kunnen dit principe toepassen door vloeistof in te zetten in technische zuignapsystemen (bijvoorbeeld bij het hanteren van glasplaten). Zo kunnen in principe grotere krachten geleverd worden.
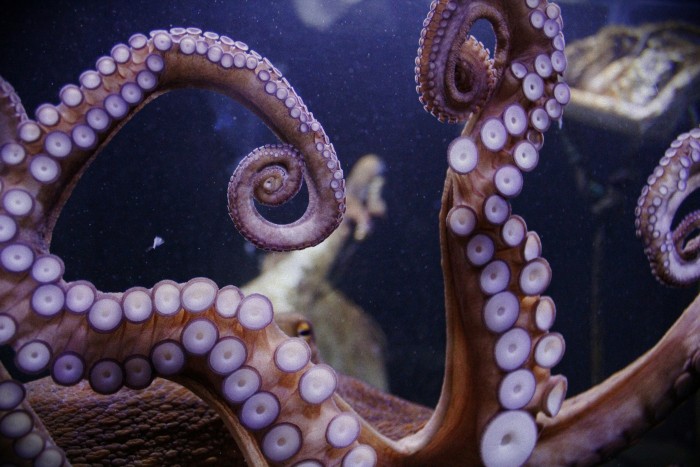
Een octopus kan met zijn zuignappen een druk van -1,7 atmosfeer maken, waardoor een grotere trekkracht ontstaat dan bij vacuümzuigen.
Mangrovebomen staan in zeewater, maar ontzilten dat in hun wortels (de sapstroom is vrijwel zoutvrij). De benodigde druk voor deze ‘omgekeerde osmose’ is bijna -30 atm en wordt kennelijk door de verdamping van de bladeren gemaakt. Mogelijk kan dit proces voor ontzilting ingezet worden.
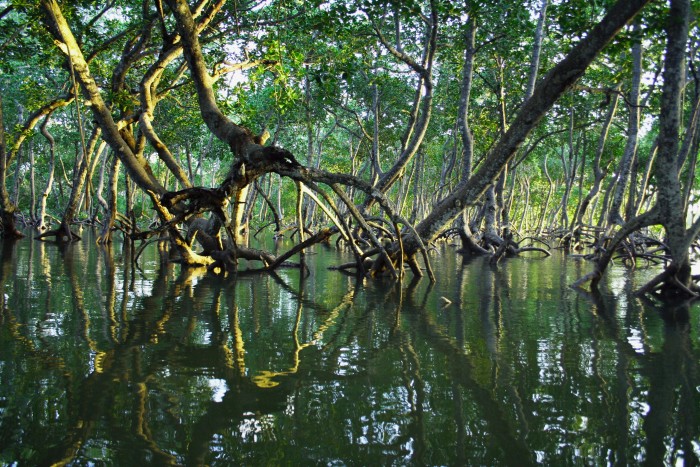
Mangrovebomen ontzilten zeewater in hun wortels – een proces waarbij een druk van -30 atmosfeer nodig is. Foto: Timothy K / Unsplash
Tot slot zijn bij een warmer wordend klimaat koelmachines belangrijk. Het verdampende water aan het bladoppervlak van een (kunstmatige) boom neemt veel warmte op uit de omgeving. Door zuiging ten gevolge van dezelfde verdamping kan het water uit de bodem aangevoerd worden. Kunstbomen kunnen dus ter verkoeling worden ingezet. Negatieve druk levert dan een positieve invloed op ons welzijn!
Rinke Wijngaarden was universitair hoofddocent bij de groep fotoconversie materialen aan de Vrije Universiteit Amsterdam en is na zijn pensionering onder andere bezig met domotica.
REFERENTIES
- Vraag 15 van de tiende Nationale Wetenschapsquiz 2003, vanaf 1:08:20.
- Kell, G.S., Early Observations of Negative Pressures in Liquids, Am. J. Phys. 51, 1038 (1983).
- Sperry, J.S., Hydraulics of Vascular Water Transport, in Wojtaszek, P. (red.), Mechanical Integration of Plant Cells and Plants, Springer-Verlag (Berlin Heidelberg 2011), p. 303
- Denny, M., Tree Hydraulics: How Sap Rises, Eur. J. Phys. 33, 43 (2012).
- Scholander, P. F. et al., Sap Pressure in Vascular Plants, Science, 148, 339 (1965).
- Zimmermann, U., et al., Water Ascent in Tall Trees: Does Evolution of Land Plants Rely on a Highly Metastable State?, New Phytol. 162, 575 (2004).
- Hayward, A.T.J., Negative Pressure in Liquids: Can It Be Harnessed to Serve Man?, American Scientist 59, 434 (1971).